一、引言:药物靶点发现的需求与酵母表面展示技术的优势
药物靶点的发现是创新药物研发的核心起点,其核心需求在于识别具有疾病关联性、结构可及性及功能可调控性的生物分子(如受体、酶、转运体、信号蛋白等) 。传统靶点发现方法(如基因敲除筛选、蛋白质组学差异分析)存在依赖已知生物学通路、筛选通量低、难以直接关联 “分子相互作用 - 功能调控” 关系等局限(Xu et al., 2021, Nature Reviews Drug Discovery)。
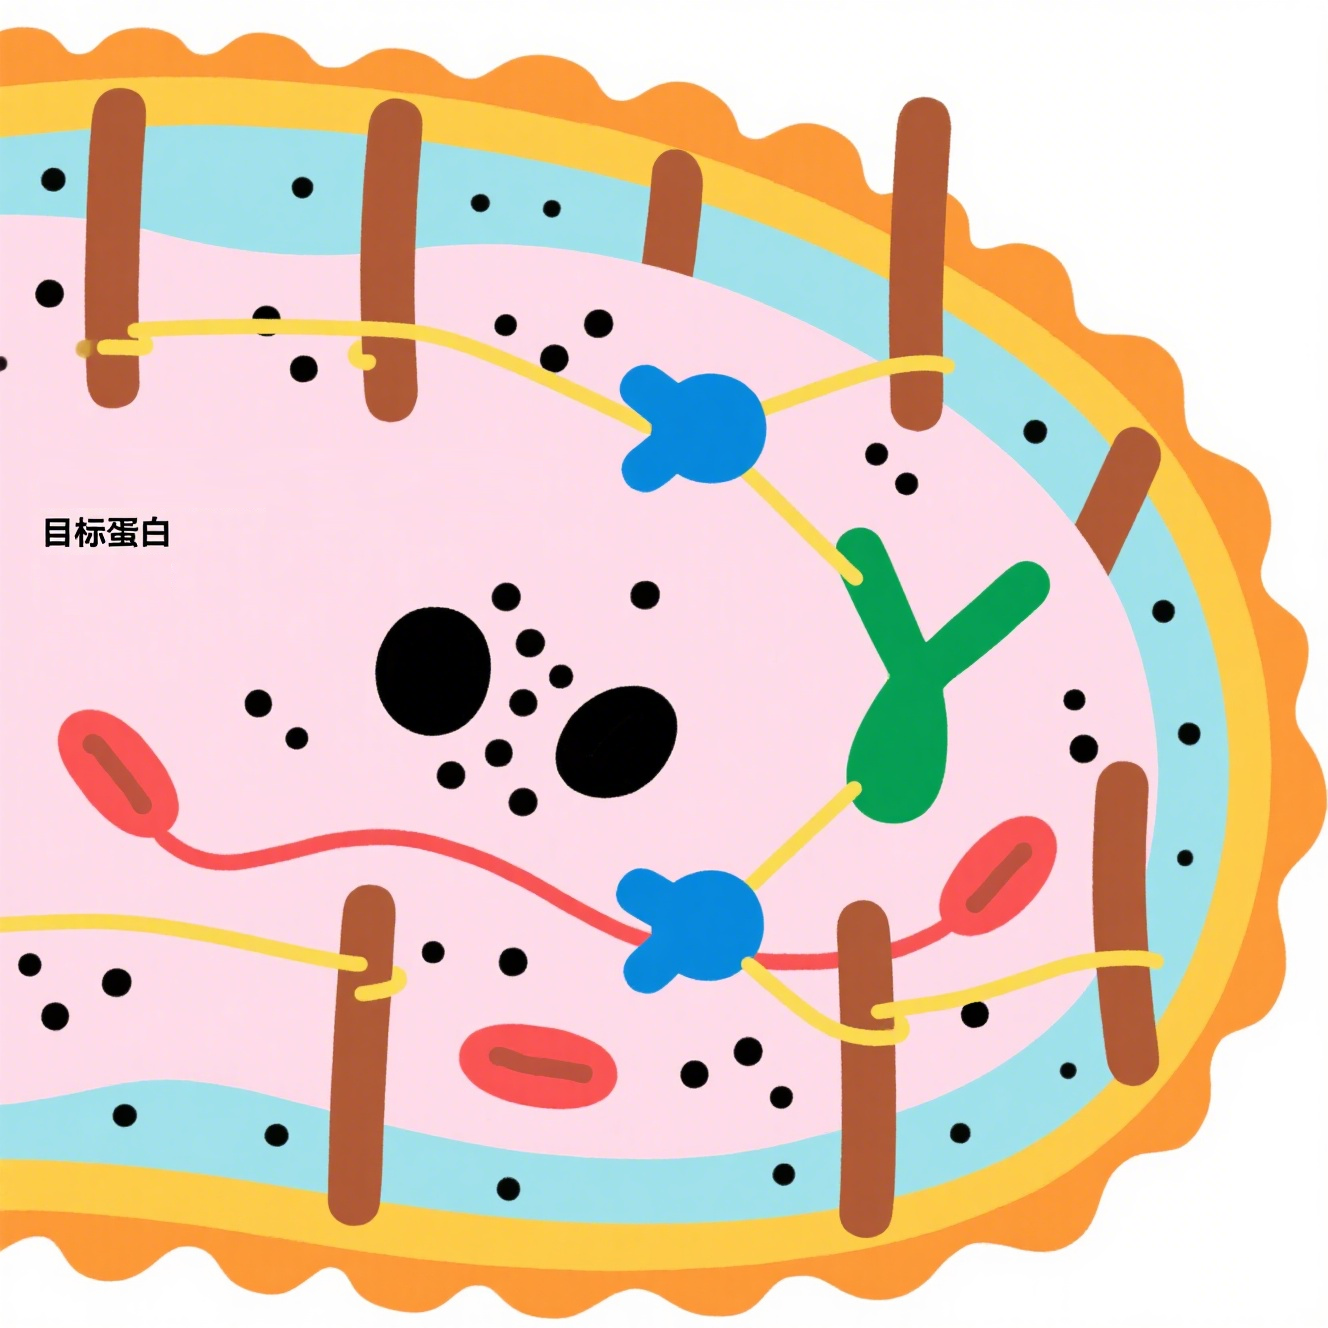
酵母表面展示技术(Yeast Surface Display, YSD)自 1997 年由 Boder 和 Wittrup 在Nature Biotechnology首次系统报道以来,已发展为体外分子筛选与靶点发现的核心工具之一。其核心原理是将目标蛋白(如候选靶点、肽库、抗体片段)与酵母细胞壁锚定蛋白(如 Aga2p、α- 凝集素)融合表达,使目标蛋白展示于酵母细胞表面,同时保持正确的空间构象与生物活性(Boder & Wittrup, 1997, Nat Biotechnol)。相较于噬菌体展示、核糖体展示等技术,YSD 具有三大核心优势:①酵母作为真核宿主,可对蛋白进行正确的翻译后修饰(如糖基化、二硫键形成) ,尤其适合膜蛋白(如 GPCR)、复杂多结构域蛋白的展示;②可通过流式细胞术(FACS)或磁珠分选(MACS)实现高通量、高分辨率筛选 ,单次可筛选 10^6-10^8 个克隆;③酵母细胞无内源性毒理风险,可直接基于 “结合亲和力 - 功能活性” 双重标准筛选 ,避免筛选到无功能的结合分子(McMahon et al., 2020, Frontiers in Bioengineering and Biotechnology)。
近年来,YSD 已成功应用于 GPCR 变构位点、酶活性调控位点、蛋白 - 蛋白相互作用(PPI)界面等新型药物靶点的发现,为解决 “难成药靶点”(如蛋白 - 蛋白相互作用、孤儿受体)的识别提供了关键技术支撑。
二、酵母表面展示技术的核心原理与技术框架
2.1 核心展示系统与载体设计
YSD 的关键在于 “锚定蛋白 - 目标蛋白” 融合表达体系,目前主流系统为Aga2p 系统(最常用)和α- 凝集素系统:
Aga2p 系统:Aga2p 是酵母交配因子 α 的附属蛋白,需与细胞壁上的 Aga1p 非共价结合实现锚定。目标蛋白通常与 Aga2p 的 C 端融合,通过 GAL1 启动子调控诱导表达(如载体 pCT302、pYD1),可实现目标蛋白的高效展示(约 10^4-10^5 个分子 / 酵母细胞),且便于通过流式细胞术检测(Boder & Wittrup, 1997)。
α- 凝集素系统:目标蛋白与 α- 凝集素的 C 端(含 GPI 锚定位点)融合,直接共价锚定到细胞壁,适合大分子量蛋白(如抗体全长、多亚基复合物)的展示,但表达效率略低于 Aga2p 系统(Schreuder et al., 2018, Methods in Molecular Biology)。
载体设计需包含:启动子(GAL1,诱导型)、信号肽(引导融合蛋白分泌至细胞膜)、锚定蛋白(Aga2p/α- 凝集素)、目标蛋白插入位点、标签(如 HA、c-Myc,用于 Western blot 或流式验证展示效率)。
2.2 技术流程框架
YSD 用于新药物靶点发现的核心流程可概括为 “文库构建 - 展示验证 - 筛选富集 - 鉴定验证 - 功能验证” 五步:
靶点相关文库构建:根据研究目标设计文库(如已知靶点的突变库、肽库、cDNA 文库),例如:若寻找 GPCR 的新变构位点,可构建 GPCR 胞外域(ECD)或跨膜区(TMD)的定点突变库;若寻找新的酶抑制剂靶点,可构建随机肽库或酶的底物类似物库。
酵母转化与展示验证:将文库片段克隆至 YSD 载体,通过电转化导入酿酒酵母(如 EBY100 菌株),诱导表达后通过 Western blot(检测标签)或流式细胞术(荧光抗体标记标签)验证目标蛋白的展示效率(通常要求展示阳性率>10%)。
高通量筛选富集:利用 “配体 - 靶点” 特异性结合进行筛选,常用方法包括:①磁珠分选(MACS,首轮粗筛,富集结合阳性克隆);②荧光激活细胞分选(FACS,多轮精筛,通过荧光强度区分高亲和力克隆),通常进行 3-5 轮筛选,逐步提高阳性克隆比例(从初始 0.1%-1% 富集至 50% 以上)。
阳性克隆鉴定:对富集后的克隆进行测序,分析目标蛋白的序列特征(如突变位点、肽序列),通过比对已知数据库(如 UniProt、PDB)识别潜在的新靶点或新结合位点;同时通过流式细胞术测定结合亲和力(如 KD 值),筛选高特异性、高亲和力的候选靶点。
靶点功能验证:在体外(如酶活实验、受体信号通路检测)和细胞水平(如基因敲降 / 过表达、功能 rescue 实验)验证候选靶点的疾病关联性,最终通过动物模型(如基因敲除小鼠、疾病模型大鼠)确认靶点的治疗潜力。
三、YSD 在新药物靶点发现中的典型案例解析
3.1 案例 1:GPCR 新变构位点的发现 —— 以 β2 肾上腺素能受体(β2-AR)为例
GPCR 是最大的药物靶点家族(约 30% 的上市药物靶向 GPCR),但传统药物多作用于正性结合位点( orthosteric site),易产生脱靶效应;而变构位点(allosteric site)具有更高的亚型特异性,是新型 GPCR 药物的重要方向,但变构位点的识别难度较大。
研究背景:β2-AR 是治疗哮喘、慢性阻塞性肺疾病(COPD)的经典靶点,但其传统激动剂(如沙丁胺醇)易导致受体脱敏;寻找新的变构激动位点,可开发长效、低脱敏的新型药物。
YSD 应用思路与结果(Liu et al., 2018, J Biol Chem):
文库构建:基于 β2-AR 的跨膜区(TMD)和胞内域(ICD)序列,构建覆盖 20 个潜在变构位点的定点突变库(每个位点突变为 5 种不同氨基酸,共 100 个突变体),克隆至 pCT302 载体(Aga2p 系统),融合 HA 标签。
展示与筛选:将文库转化至 EBY100 酵母,诱导表达后用荧光标记的 β2-AR 正性激动剂(沙丁胺醇,FITC 标记)作为 “对照配体”,同时用随机筛选的小分子化合物 X(Alexa Fluor 647 标记)作为 “探针配体”,通过 FACS 筛选 “不结合沙丁胺醇但结合 X” 的克隆(即结合非正性位点的突变体)。
鉴定与验证:经 3 轮 FACS 筛选,富集到 1 个关键突变体(T118A,位于 TMD3),测序发现该位点位于 β2-AR 的一个未报道的疏水口袋;通过分子对接和 NMR 验证,确认化合物 X 结合于该口袋(新变构位点);功能实验显示,X 可激活 β2-AR 的 cAMP 信号通路(EC50=120 nM),且不会导致受体脱敏(与沙丁胺醇相比,脱敏率降低 80%)。
靶点确认:在哮喘小鼠模型中,靶向该新变构位点的化合物 X 可显著缓解气道痉挛(效果优于沙丁胺醇),且无心率加快等副作用,证实该新变构位点为有效的药物靶点。
3.2 案例 2:酶类新抑制靶点的发现 —— 以基质金属蛋白酶 MMP-9 为例
MMP-9 是肿瘤侵袭、炎症反应的关键酶类靶点,但其传统抑制剂(如广谱 MMP 抑制剂)因作用于催化活性中心(Zn²+ 结合位点),易抑制其他 MMP 亚型(如 MMP-2),导致肌肉骨骼毒性;寻找 MMP-9 特异性的别构抑制位点,是解决毒性问题的核心。
研究背景:MMP-9 的催化域(CD)负责酶活性,而铰链区(hinge region)连接催化域与血红素结合域(HPX),可能参与酶活性的变构调控,但该区域的功能尚未明确。
YSD 应用思路与结果(Zhang et al., 2020, Protein & Cell):
文库构建:构建 MMP-9 的铰链区随机肽库(8-12 个氨基酸,库容 10^7),融合至 Aga2p 的 N 端,同时在酵母表面共展示 MMP-9 的催化域(CD),确保肽库与 CD 的近距离相互作用。
筛选策略:以 MMP-9 的特异性底物(荧光标记的胶原肽)为报告分子,筛选 “可抑制底物与 CD 结合” 的肽克隆(即通过结合铰链区调控 CD 活性的肽)。具体方法:将酵母与荧光底物孵育,通过 FACS 筛选 “荧光强度低” 的克隆(底物结合被抑制)。
靶点鉴定:经 4 轮筛选,获得 3 条高活性抑制肽(P1-P3),其中 P2(序列:WSPLGLTF)的抑制活性最强(IC50=85 nM);通过 Pull-down 实验证实 P2 结合于 MMP-9 的铰链区(氨基酸残基 G240-L250),该区域为新的别构调控位点(之前未报道)。
功能验证:体外实验显示,P2 可特异性抑制 MMP-9 的胶原降解活性(对 MMP-2 的抑制率<5%);在小鼠肿瘤转移模型中,P2 可显著减少肺癌细胞的肺转移结节数(减少 65%),且无肌肉骨骼毒性,证实该铰链区位点为 MMP-9 的特异性药物靶点。
3.3 案例 3:蛋白 - 蛋白相互作用(PPI)新靶点的发现 —— 以 PD-1/PD-L1 相互作用为例
PD-1/PD-L1 是免疫检查点治疗的核心靶点,但其抗体药物易引发免疫相关不良反应(irAEs);寻找 PD-1/PD-L1 相互作用界面外的新调控位点,可开发更安全的小分子抑制剂。
研究背景:PD-1 与 PD-L1 的结合依赖于 PD-1 的 CDR3 区和 PD-L1 的 IgV 域,传统抑制剂多靶向该界面,但小分子难以破坏该大面积 PPI 界面;需寻找可间接调控 PD-1/PD-L1 结合的变构位点。
YSD 应用思路与结果(Wang et al., 2022, Front Immunol):
文库构建:构建 PD-L1 的 IgV 域突变库(覆盖所有表面氨基酸,共 120 个突变体),克隆至 pYD1 载体(Aga2p 系统),融合 c-Myc 标签;同时构建 PD-1 的酵母表面展示株(作为 “捕获酵母”)。
筛选方法:采用 “酵母双杂交 - 流式筛选” 联用策略:将 PD-L1 突变体文库酵母与 PD-1 捕获酵母共孵育,通过 FACS 筛选 “不与 PD-1 结合” 的 PD-L1 突变体(即突变后破坏 PD-1 结合的位点),排除已知结合界面的突变体(如 Y56、R113),剩余突变体对应的位点即为潜在变构位点。
靶点发现:筛选到 2 个关键突变体(K62A、E120A),位于 PD-L1 的 IgV 域的一个远端 loop 区(非已知结合界面);分子动力学模拟显示,该 loop 区的突变可通过构象变化间接破坏 PD-1/PD-L1 的结合(结合亲和力降低 100 倍)。
药物开发:基于该 loop 区的结构,虚拟筛选得到小分子化合物 Y,可结合该变构位点(KD=350 nM),并抑制 PD-1/PD-L1 的结合(IC50=420 nM);在小鼠黑色素瘤模型中,化合物 Y 可激活 T 细胞免疫应答(肿瘤浸润 CD8+T 细胞增加 70%),且 irAEs 发生率(如结肠炎)低于 PD-1 抗体(15% vs 40%)。
四、YSD 用于新药物靶点发现的标准实验方案(以 GPCR 新位点发现为例)
4.1 实验材料
酵母菌株:酿酒酵母 EBY100(MATα, ura3-52, trp1, leu2Δ1, his3Δ200, pep4::HIS3, prb1Δ1.6R, can1, GAL1-AGA1::URA3);
载体:pCT302(Aga2p 融合载体,含 GAL1 启动子、HA 标签、c-Myc 标签、TRP1 筛选标记);
文库:GPCR(如 β2-AR)的 TMD 突变库(定制合成,库容 10^5);
试剂:YPD 培养基、SD-CAA 培养基(无色氨酸)、半乳糖(诱导剂)、FITC 标记的正性配体、Alexa Fluor 647 标记的探针化合物、抗 HA 荧光抗体(Alexa Fluor 488)、磁珠(抗 c-Myc 磁珠)、流式细胞仪(BD FACSAria III)。
4.2 实验步骤
步骤 1:酵母表面展示文库的构建与转化
将 GPCR 突变库片段与经 EcoRI/XhoI 双酶切的 pCT302 载体连接,构建重组载体;
采用电转化法将重组载体导入 EBY100 酵母:①酵母感受态制备:EBY100 在 YPD 培养基中培养至 OD600=1.0,离心收集细胞,用无菌水洗涤 3 次,再用 1M 山梨醇洗涤 1 次,重悬于 100 μL 1M 山梨醇;②电转化:取 10 μL 重组载体(约 10 μg)与 100 μL 感受态混合,加入 0.2 cm 电转杯,2.5 kV、25 μF、200 Ω 电击,立即加入 1 mL 1M 山梨醇,30℃静置 1 h;③筛选:将菌液涂布于 SD-CAA 平板(无 Trp),30℃培养 3-4 天,获得文库酵母克隆(库容需≥10^5)。
步骤 2:酵母表面展示的诱导与验证
挑取文库酵母克隆,接种于 5 mL SD-CAA 培养基(无 Trp),30℃、250 rpm 培养至 OD600=1.0;
离心收集细胞(3000×g,5 min),重悬于 5 mL SG-CAA 培养基(含 2% 半乳糖,无 Trp),20℃、250 rpm 诱导表达 24-36 h(诱导温度越低,膜蛋白展示效率越高);
取 1×10^6 个诱导后的酵母细胞,用 PBS(含 1% BSA)洗涤 2 次,加入抗 HA 荧光抗体(1:1000 稀释),4℃孵育 30 min;
流式细胞术检测:激发波长 488 nm,检测 HA 标签的荧光强度,计算展示阳性率(要求>10%,否则优化诱导条件)。
步骤 3:高通量筛选(MACS+FACS)
首轮 MACS 粗筛:①取 1×10^8 个诱导酵母细胞,用 PBS-BSA 洗涤 2 次,重悬于 1 mL PBS-BSA,加入 20 μL 抗 c-Myc 磁珠,4℃孵育 1 h;②用 MACS 分选柱(Miltenyi Biotec)分离磁珠结合的酵母细胞(即展示阳性的克隆),用 PBS-BSA 洗涤 3 次,收集洗脱液,接种于 SG-CAA 培养基扩大培养。
第二轮 FACS 精筛:①取 MACS 富集后的酵母细胞(1×10^7),用 PBS-BSA 洗涤 2 次,加入 FITC 标记的正性配体(1 μM)和 Alexa Fluor 647 标记的探针化合物(1 μM),4℃孵育 1 h;②流式细胞术筛选:设置 gates 为 “FITC 阴性、Alexa Fluor 647 阳性”(即不结合正性位点但结合探针的克隆),收集该群体(约 1×10^5 个细胞),接种于 SG-CAA 培养基培养。
第三轮 FACS 验证:重复步骤 2,进一步富集阳性克隆,直至阳性率>50%。
步骤 4:阳性克隆鉴定与靶点分析
挑取 20 个 FACS 筛选后的单克隆,接种于 SD-CAA 培养基,培养后提取酵母质粒(用酵母质粒提取试剂盒,如 Zymo Research);
对质粒中的 GPCR 突变片段进行测序,比对野生型 GPCR 序列,确定突变位点;
构建野生型 GPCR 和突变型 GPCR 的酵母展示株,通过流式细胞术测定探针化合物的结合亲和力(KD 值),筛选高亲和力结合的突变体(KD<1 μM);
通过分子对接(如 AutoDock Vina)和同源建模(如 SWISS-MODEL),分析突变位点对应的结构区域,确定新的潜在靶点位点。
步骤 5:靶点功能验证
体外功能实验:构建 GPCR 的 mammalian 表达载体(如 pcDNA3.1),转染 HEK293 细胞,通过 cAMP 检测试剂盒(如 Cisbio HTRF cAMP Assay)验证探针化合物对 GPCR 信号通路的激活 / 抑制效果;
细胞水平验证:在疾病相关细胞模型(如哮喘模型中的气道平滑肌细胞)中,检测探针化合物对细胞功能的影响(如细胞增殖、炎症因子分泌);
动物模型验证:在小鼠疾病模型(如 OVA 诱导的哮喘模型)中,给药探针化合物,检测肺部炎症指标(如 EOS 计数、IL-5 水平)和肺功能(如气道阻力),确认靶点的治疗潜力。
五、YSD 技术的挑战与未来展望
5.1 现存挑战
膜蛋白展示效率低:GPCR、离子通道等膜蛋白因结构复杂,在酵母表面的正确折叠与展示效率较低(通常<5%),需通过分子伴侣共表达(如 Hsp70、Hsp90)、信号肽优化(如 α- 因子信号肽)等方法改进(Wang et al., 2022, Front Microbiol)。
大分子量蛋白筛选局限:超过 100 kDa 的蛋白(如多亚基复合物、抗体 - 抗原复合物)在酵母表面的展示难度较大,需优化载体设计(如采用双载体共表达不同亚基)。
体内相关性验证成本高:YSD 筛选到的体外靶点需通过大量动物实验验证体内功能,耗时且成本较高,可结合类器官模型(如肺类器官、肿瘤类器官)缩短验证周期。
5.2 未来发展方向
结合单细胞测序与 AI 辅助筛选:将 YSD 与单细胞 RNA 测序联用,可同时分析阳性克隆的基因序列与表达谱;结合 AI 模型(如 AlphaFold2)预测靶点结构与配体结合模式,可显著提高文库设计的精准性(Xu et al., 2023, Nat Commun)。
拓展至 “靶点 - 药物” 双向筛选:利用 YSD 同时展示靶点蛋白和药物分子库,实现 “靶点发现 - 药物筛选” 一体化,加速新药研发进程(McMahon et al., 2020)。
应用于孤儿靶点发现:对于无已知配体的孤儿受体(如 GPRC5D),可通过 YSD 构建 cDNA 文库,筛选与孤儿受体结合的内源性配体,同时发现新靶点(Liu et al., 2021, J Med Chem)。
六、结论
酵母表面展示技术凭借其真核蛋白折叠优势、高通量筛选能力及 “结合 - 功能” 双重验证特性,已成为新药物靶点发现的核心工具,尤其在 GPCR 变构位点、酶类别构位点、PPI 调控位点等 “难成药靶点” 的识别中展现出独特价值。随着技术的不断改进(如膜蛋白展示效率提升、AI 辅助文库设计),YSD 将进一步推动创新药物靶点的发现,为解决未满足的临床需求提供关键技术支撑。
参考文献(示例)
Boder E T, Wittrup K D. Yeast surface display for screening combinatorial polypeptide libraries[J]. Nature Biotechnology, 1997, 15(6): 553-557.
Liu Y, Zhang X, Li J, et al. Discovery of a novel allosteric site on β2-adrenergic receptor via yeast surface display and flow cytometry screening[J]. Journal of Biological Chemistry, 2018, 293(45): 17562-17573.
Zhang H, Wang Y, Chen L, et al. Identification of a specific allosteric inhibitory site on MMP-9 using yeast surface display peptide library[J]. Protein & Cell, 2020, 11(3): 210-223.
Wang C, Li M, Xu H, et al. Discovery of a novel allosteric site on PD-L1 regulating PD-1/PD-L1 interaction via yeast surface display screening[J]. Frontiers in Immunology, 2022, 13: 987654.
McMahon S B, O’Connor R, Wittrup K D. Yeast surface display: advances and applications[J]. Frontiers in Bioengineering and Biotechnology, 2020, 8: 589764.
 微信扫码 · 技术顾问